Un condensado para ordenar el interior de las células
Te mojas la punta de los dedos para pasar mejor las páginas de un libro y aprovechas las fuerzas capilares: una fina película de líquido basta para que dos superficies se peguen. Con el pelo mojado pasa lo mismo, y los cabellos se juntan en mechones. Un equipo de la Universidad de Princeton ha comprobado, con proteínas purificadas, que algo parecido puede mantener unidos los microtúbulos, filamentos esenciales de las células.
Filamentos que trabajan en equipo
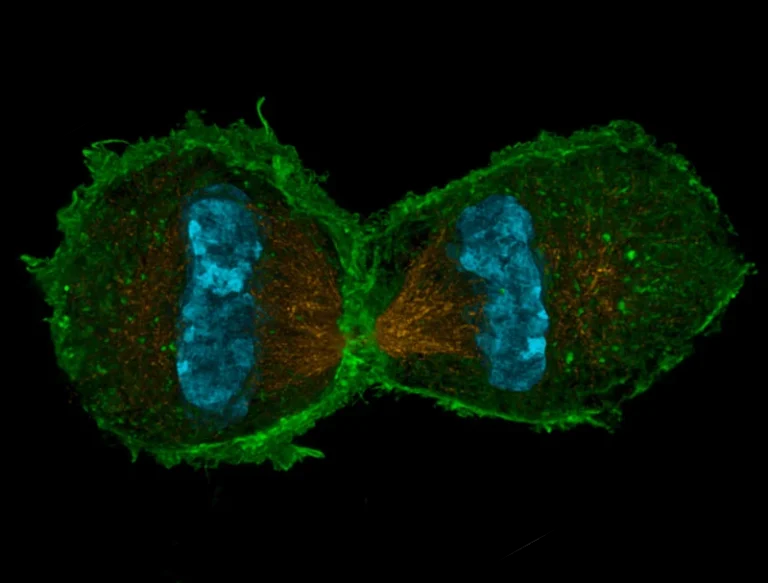
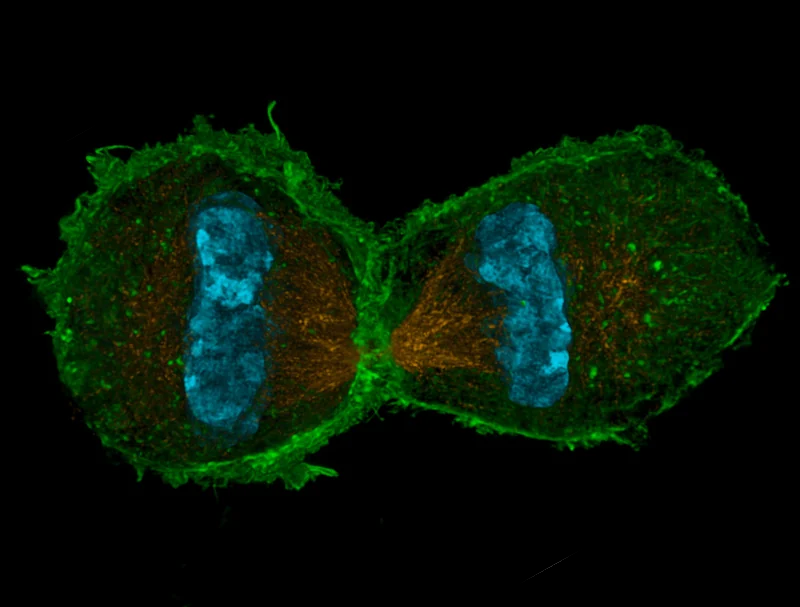
El citoesqueleto, una red de filamentos, da forma a las células. Una de sus piezas son los microtúbulos, tubos huecos de unos 25 nanómetros de diámetro hechos de una proteína, la tubulina. Cuando la célula se divide, forman el huso mitótico, la estructura que reparte los cromosomas entre las células hijas.
Los microtúbulos suelen agruparse en haces, sobre todo en la división, porque el huso soporta fuerzas considerables. La explicación habitual es que ciertas proteínas funcionan como grapas: se agarran a dos microtúbulos a la vez y los mantienen juntos.
Una pista que no encaja
Muchas proteínas que se asocian a los microtúbulos forman condensados biomoleculares: acumulaciones de moléculas que se comportan como gotas sin membrana y aparecen cuando se concentran lo bastante para separarse del resto del contenido celular. En casi todos los estudios, además, los microtúbulos acababan agrupados en haces. Pero la mayoría de esas proteínas tiene, como mucho, un único punto de unión, y con uno solo no se puede hacer de grapa.
Sabine Petry, bióloga molecular, y Howard Stone, ingeniero, sospecharon otra explicación: las gotas recubrirían los filamentos y los juntarían por fuerzas capilares. Entre dos microtúbulos próximos se formaría un puente de líquido, y la tensión interfacial, que hace que una gota tienda a reducir su superficie, tiraría de ambos. No haría falta ninguna grapa.
Dos proteínas y un control
Trabajaron con microtúbulos y dos proteínas purificadas, TPX2 y BuGZ. TPX2 tiene dos zonas de unión y BuGZ solo una, y esa diferencia era el centro del experimento: TPX2 podía agrupar por las dos vías, pero BuGZ no podía hacer de grapa.
Marcaron proteínas y microtúbulos con sustancias fluorescentes y los observaron en muestras con concentraciones crecientes de proteína. A partir de cierto punto aparecían gotas y películas a lo largo de los haces. BuGZ también agrupaba los microtúbulos, y lo hacía justo cuando su concentración se acercaba a la necesaria para formar condensados.
Como control usaron Eg5, una proteína motora que, con muy poco combustible (ATP), se une a los filamentos y los engancha sin moverlos. Eg5 también agrupa, pero no forma condensados, y en sus haces no había gotas ni películas.
Medir el condensado
Con un microscopio de fuerza atómica midieron la adherencia entre su punta y microtúbulos recubiertos de condensado. De ahí estimaron la tensión interfacial, mayor en TPX2 que en BuGZ. Con gotas más grandes midieron la viscosidad: unas quinientas veces la del agua. Son estimaciones aproximadas, pero apuntan a fuerzas capilares apreciables.
Después filmaron dos microtúbulos con TPX2 que se tocaban formando un ángulo: se cerraban hasta quedar en paralelo en menos de treinta segundos, como describía su modelo físico. El modelo también predice que, al final, el condensado que queda entre los filamentos tiene que ser expulsado para que se toquen. Eso ocurre en una fracción minúscula de segundo y no se ha podido observar.
Un líquido que también frena
Estudiaron por último cómo afectaba BuGZ al deslizamiento de microtúbulos que provoca Eg5. Sin BuGZ, el motor los deslizaba a unos 1,8 micrómetros por minuto. Al añadir proteína iban más despacio, tanto más cuanta más había, hasta que se formaban los condensados. Entonces la velocidad se quedaba en torno a una quinta parte de la inicial y ya no bajaba, por mucha proteína que añadieran.
Atribuyen el freno a la viscosidad del condensado. Por encima del umbral su composición no cambia, solo hay más cantidad, y por eso el freno no aumenta.
¿Ocurre esto en las células?
Todo se hizo fuera de la célula, y los autores subrayan que no afirman que el mecanismo actúe en células vivas, donde hay muchos más componentes. Tampoco significa que los condensados sustituyan a las grapas: pueden convivir.
Charles Day hace hincapié en un artículo Physics sobre estos resultados que TPX2 está retenida al empezar la mitosis y, poco después, factores activados por una proteína de los cromosomas la liberan a su alrededor, a lo que Stone sugiere que allí podría condensarse y agrupar microtúbulos. Ante la objeción de que una división tan delicada como la celular podría fallar si dependiera de un aumento brusco de concentración, Stone responde que las células saben forzar la condensación donde y cuando hace falta. Vamos, lo que Einstein venía en llamar variables ocultas. Esto es algo que solo más experimentación puede aclarar. De momento, interesante porque los fallos durante la división celular se relacionan con varias enfermedades, pero con cautela.
Referencias:
B. Gouveia, J. P. de Souza et al. (2026) Capillary bundling of microtubules by condensates PRX Life doi: 10.1103/5flw-5xzh.
Charles Day (2026) More Than One Way to Assemble Molecular Scaffolding Physics 19, 141
Sobre el autor: César Tomé López es divulgador científico y editor de Mapping Ignorance